måndag 3 april 2023

Laccaic acid , luonnontuote, jossa on oxodikarboxyylihaapo substituutio , E904 Shellack

 https://pubchem.ncbi.nlm.nih.gov/compound/Laccaic-acid-A


PubChem CID5491415
Structure
Laccaic acid A_small.png
Laccaic acid A_3D_Structure.png
Molecular FormulaC26H19NO12
Synonyms

LACCAIC ACID A

15979-35-8

CHEMBL2037378

CHEBI:90186

7-[5-(2-acetamidoethyl)-2-hydroxyphenyl]-3,5,6,8-tetrahydroxy-9,10-dioxoanthracene-1,2-dicarboxylic acid

Molecular Weight

537.4

Dates
  • Modify

    2023-04-01

  • Create

    2005-08-09

onsdag 23 juni 2021

Kinoliinihappo ja muita COVID-19 taudissa koholla olevia katabolisia välituotteita .

 On havaittu, että  COVID-19 taudissa on  fenokonversiotaq  aminohappojen ja metabolisten  välituotteiden määrissä.

Lisääntynein määrin esiintyviä COVID-19  potilailla ovat: 

 Glutamic acid, Glutamate  eli glutamaatti,  glutamiinihappo (E, glu), tämä on excitatorinen aminohappo. Rakenneaminohappo
Quinolinate, kinolinaatti (*), Kinoliinihappo, (QA)
Aspartic acid, aspartate,   aspartaatti (D, Asp), Excitatorinen aminohappo, rakenneaminohappo
Phenylalanine, fenylalaniinbi (F, phe), rakenneaminohappo, essentielli
Neopterin, neopteriini
Kynurenine, kynureniini (*) (KYN) 
Nicotinic acid, Nikotiinihappo (*) (NA)
5-Hydroxykynurenine, 5 hydroksikynureniini (*), (5-HK)
Alanine,  alaniini (A, ala), rakenneaminohappo
Proline, proliini, (P, pro), rakenneaminohappo
Taurine (**) tauriini, ei- rakenneaminohappo, aminosulfonihappo,
Lysine, lysiini, (K, lys), rakenneaminohappo, essentielli
Etanolamine, etanolamiini (EA),  seriinin (S, ser)   biogeeninen amini  
Alfa-amino-butyric acid*), (AABA), alfa-aminovoihappo, cystathioniinin (CSH) kataboliasta  homoseriinistä eteenpäin, (biomerkitsijäaine huonosta  glukoositoleranssista)
Glutamine, glutamiini , (Q, gln), rakenneaminohappo
Isoleucine, isoleusiini (I, ile), rakennehappo, essentielli. 
1-methyl-histidine, 1-metyylihistidiini, 1-Me-His.( telencephalon histidiinimuoto)
 Nicotinamide ribosyl  (*?)
Glycine, glysiini, (G, gly), rakenneaminohappo,  inhibitorinen aminohappo 
 Ornithine, ornitiini, ORN, ei-rakenneaminohappo, UREA-syklin osa 
Leucine, leusiini, (L, leu), rakenneaminohappo, essentielli) 
Serine, Seriini (S, ser), rakenneaminohappo, 
Tyrosine, tyrosiini, (Y, tyr), rakenneaminohappo, essentielli.
4-OH-proline, 4-hydroxyproline,  4-hydroksiproliini (Hyp), rakenneaminohappo, joka muodostuu posttranslationaalisesti  proliinista (P, pro)
Kynurenine acid (KYNA), kynureenihappo (*), neuroprotektiivinen  NMDA reseptorin kompetitiivinen antagonisti Gly-kohtaan. 
Arginine, Arginiini()R, arg), rakenneaminohappo,  UREA-syklin osa  
Methionine (**), metioniini, (M, met), rakenneaminohappo, essentielli.
Valine, valiini (V, val), rakenneaminohappo,  essentielli.
 
Kontrolleihin verrattuna vähentynein määrin esiintyviä COVID-19 potilailla ovat: 
 
Histidine, histidiini, (H, his),   rakenneaminohappo, toisille  essentielli
Tryptophane, tryptofaani (W, trp), rakenneaminohappo, essentielli
Xanthurenic acid, xantureenihappo (*),  tryptofaanikataboliasta B6 puutteessa.
Citrulline (Karbamylornithine),, sitrulliini, UREA-syklin jäsen,  ei-rakenneaminohappo.
5-OH-anthranilic acid,(5-HANA) 5-hydroksiantraniilihappo (*) tryptofaanikataboliassa kynureenitiessä .
Serotonin, 5-OH-tryptamine, , serotoniini,  biogeeninen aminimuoto tryptofaaniaineenvaihdunnasta.
Indole-3-acetic- acid indoli-3-etikkahappo (*), tryptofaanin normaaleja  eritysmuotoja.
Picolinic acid, picolinate, pikoliinihappo (*), nikotiinihappoisomeeri tryptofaanin aineenvaihdunnasta.
Asparagine, asparagiini (N, asn), rakenneaminohappo.
Threonine, treoniini, (T, thr), rakenneaminohappo, essentielli. 
5-hydroxy-indole-acetic acid,  5-HIAA, 5-OH-indolietikkahappo (*). Normaali erittyvä päätetuote  tryptofaanin aineenvaihdunnasta. 
NAD, (?*)
Alfa-Amino adipic acid, alpha-aminoadipate, aminoadipiinihappo, lysiinin (K, lys)  normaali aineenvaihduntatuote. ei-rakenneaminohappo, dikarboksyylihappo.
5-methyl-histidine,  5-metyylihistidiini, 5-Me-His, telencephalon histidiinejä.


Tryptofaanin aineenvaihduntaan kuuluvia (*)

Rikin (S) aineenvaihduntaan kuuluvia (**)Huom. Virus kiskoo epäorgaanista rikkiä rakentaen Fe/S klustereita viruksen  polymeraasikoneiston avuksi.  Tästä ilmenee AABA katabolinen rikitön muoto ilmeisesti.


https://www.sciencedirect.com/topics/medicine-and-dentistry/quinolinic-acid

Sitaatti kinoliinihaposta, jonka pitoisuudet on havaittu nousseen COVID_19 taudissa, kuten monen muunkin molekyylin pitoisuus tryptofaanin aineenvaihdunnasta.

 QA on 2,3-pyridiinidikarboksyylihappo, jota muodostuu tryptofaanin kataboliassa kynureniinitiessä. Koska tryptofaani, eräs essentielli aminohappo, pystyy menemään aivojen puolelle,  pääsee QA täten muodostumaan useissa  soluissa, jotka ovat ottaneet tryptofaania (  eli astrosyyteissä, makrofageissa, mikrogliasoluissa ja denriittisoluissa) ja  joissa  muodostuu kynureniinia.

Quinolinic Acid (QA)

J.L. McBride, ... J.H. Kordower, in Encyclopedia of Movement Disorders, 2010

Description and Mechanism of Pathogenesis

Quinolinic acid (QA) is a 2,3-pyridine dicarboxylic acid (C7H5NO4). QA is produced following the metabolic breakdown of the amino acid tryptophan, via the kynurenine pathway. Tryptophan is able to cross the blood–brain barrier (BBB), and upon entering the brain, is taken up by astrocytes, macrophages, microglia, and dendtritic cells and converted into kynurenine.  enzyme,kynureninase,  kynurenine  is converted to  3-hydroxyanthranilic acid,  this is  converted into QA through a series of enzymatic( and non-enzymatic)  reactions.

 QA is normally present in extremely low, nanomolar concentrations in the brain and in cerebrospinal fluid and does not cause damage to the surrounding cells. However, it has been recently demonstrated that increased levels of QA can be produced by activated macrophages and microglia in the brain. 

Accumulation of endogenous QA has recently been implicated in the etiology of certain neurodegenerative diseases, especially those with a strong inflammatory component, such as Parkinson’s disease (PD), amyotrophic lateral sclerosis (ALS), Huntington’s disease (HD), Alzheimer’s disease (AD), stroke, multiple sclerosis (MS), and epilepsy.

QA exerts its biological effects by binding to and potentiating Mg2+-sensitive N-methyl-d-aspartate (NMDA) receptors, which normally bind the neurotransmitter, glutamate. As such, QA acts as a glutamate agonist and can potentiate NMDA receptors to the point of excitotoxicity. Specifically, overstimulating this receptor subtype allows high levels of calcium ions (Ca2+) to enter the cell, activating enzymes such as endonucleases, phospholipases, and proteases. These enzymes can then go on to damage cellular structures such as components of the cytoskeleton, membrane, and DNA and ultimately cause cell death. QA administration induces both apoptotic and necrotic types of neurodegeneration. In addition to a loss of neurons, QA administration also leads to a robust increase in the number of astrocytes (astrocytosis) and reactive microglia (microgliosis) in the region of the lesion.

 HARPER:haen esiin vanhan kirjani ja katson miten kynureenitie menee.

Tryptophan ( essentielli aminohappo, rakenneaminohappo,  ravinnossa saatava, W, trp)

Aromatic aminoacid  decarboxylase:  tryptamine ( biog. amine)

Tryptophan pyrrolase, O2, Fe++: N-Formylkynurenine

(immuneactivation)

N-Formylkynurenine + H2O : Kynurenine (KYN)  ( stress substance)     and  +HCOOH

B6 Deficienbcy:  Xanthurenic acid ( unnormal metabolism)

Kynurenine->  Kynurenic acid (KYNA)  and  alfa-KG+ (NH3) . KYNA is neuroprotective and NMDAR antagonist in Gly site. 

Kynurenine + O2 + NADPH -> 3-OH-kynurenine (3-HK)

3-HK + Kynureninase + B6-PO4 -> 3-OH-antranilate (3-HANA)  and alanine

2-HANA + O2, -SH required -> alfa-amino-beta-carboxymuconic acid semialdehyde 

a)
alfa-amino-beta-carboxymuconic acid semialdehyde

 (rapidly decarboxylated to alfa-amino-muconic semialdehyde  , then

1)  ( in liver, B6,  enzymatically) ->alfa-hydroxy- muconic acid  semialdehyde

2) NAD+ ->>alfa-oxalocrotonate and NADH+H2

3) NADH+H+->> alfa-ketoadipate and NAD+

4) CoASH, NAD+ ->> Glutaryl-CoA and  CO2 and NADH+H+ 

5) CoASH -> 2 Acetyl-SCoA and CO2.

b)

alfa-amino-beta-carboxymuconic acid semialdehyde 

Spontaneous  non-enzymatic ring closure, neurotoxic  pathway (chorea Huntington type)

-> Quinolinate (QA or QUINA)  and H2O 

QA  - CO2 ( decarboxylation)  -> Nicotinic acid  (NA)

c) Also enzymatic pathway  in Liver;  B6 vitamin required.

From alfa-amino-beta-carboxymuconic acid semialdehyde

alfa-picolinate,  isomere of nicotinic acid


fredag 20 juli 2018

K-malonylaatio, K-sukkinylaatio ja K-glutarylaatio ja niiden säätely Sirtuiinilla SIRT5

https://www.ncbi.nlm.nih.gov/pubmed/25717114
 http://www.mcponline.org/content/14/9/2308.full

Mol Cell Proteomics. 2015 Sep;14(9):2308-15. doi: 10.1074/mcp.R114.046664. Epub 2015 Feb 25.
Metabolic Regulation by Lysine Malonylation, Succinylation, and Glutarylation.
Hirschey MD1, Zhao Y2. Abstract
Proteiinin aktivaatio on runsaasti  tutkittu säätelymekanismi, jota usea soluprosessi tarvitsee aivan geenin ilmentymästä aineenvaihduntaan. Uusiin löytöihin  posttranslationaalisista modifikaatioista kuuluu malonylaatio, sukkinylaatio ja glutarylaatio ja niistä on saatu  laajempaa käsitystä  proteiineissa havaituista modifikaatioista. Nämä kolme  lysiinin (K)  happomodifikaatiota ovat raketneellisesti samankaltaisia, mutta niillä on kykyä säädellä  eri proteiineja eri teissä.  SIRT5, sirtuiini 5- deasylaasiproteiini, katalysoi  näiden modifikaatioiden  poistoa  laajasta proteiinijoukosta erilaisissa soluaitioissa . Tässä artikkelsisa  tehdään katsausta näistä uusista modifikaatioista, niiden säätymisestä SIRT5-sirtuiinilla ja niiden merkityksen  selkenemisestä solusäätelyssä ja taudeissa.
Tähän  artikkeliin liittyy  havainnollsitavat kuvat. Samassa proteiinisa saattaa olla monenlaista modifikaatiota.  Kun vertaa modifikaatiota  asetylatio tai  nämä kolme mainittua muuta  happoa,  perusero näitten kesken on se, että  asetylaatio  tuottaa nolla (0)varauksen,  mutta  näiden muiden  modifikaatiot  tuottavat summana miinus (-)varauksen, koska ne ovat  dihappoja.

SIRT5  tarvitsee NAD+  kofaktoria  funktioonsa, kun poistaa  substraateista mainittuja dihappotähteitä.  Tästä kertoo  toinen kuva.

Kolmas kuva  selventää missä aitioissa  näitä   dihappoja esiintyy ja mistä  niitä muodostuu. (malonyl, sukkinyl,  glutaryl) . Sirtuiinien  metabolinen funktio  on  tasossa, joka tunnistaa  energeettistä stressiä ja säätelee  rasva ja hiilihydraatti energiateiden välistä tasapainoa aktivoituen  ravinto ja energia vajeen aiheuttamasta stressista tai virikkeestä.

(Sivumaininta: MalonylCoA on taas Krebsin syklin reservilähdettä ,  josta voi muodostua   Acetyl CoA   eMDC entsyymin avulla.  K- asetylaatio aktivoi  entsyymin, mutta  sitä entsyymiä taas vaimentaa SIRT4 toimittama K-deasetylaatio;  SIRT4  on ADP-ribosyltransferaasi, joka inhiboi myös  glutamiinihappodehydrogenaasin aktiivisuutta  ja säätää alas insuliinin  eritystä ja rasvahappo-oksidaatiota, sekä  mitokondriaalisten geenien ilmenemää lihaksessa ja maksassa)
  • Protein acetylation is a well-studied regulatory mechanism for several cellular processes, ranging from gene expression to metabolism. Recent discoveries of new post-translational modifications, including malonylation, succinylation, and glutarylation, have expanded our understanding of the types of modifications found on proteins. These three acidic lysine modifications are structurally similar but have the potential to regulate different proteins in different pathways. The deacylase sirtuin 5 (SIRT5) catalyzes the removal of these modifications from a wide range of proteins in different subcellular compartments. Here, we review these new modifications, their regulation by SIRT5, and their emerging role in cellular regulation and diseases.
PMID:
25717114
PMCID:
PMC4563717
DOI:
10.1074/mcp.R114.046664
[Indexed for MEDLINE]
Free PMC Article

Malonihappoa koskevaa. Malonihappodekarboksylaasi MCD. Sirtuiini SIRT4


MALONYYLIÄ koskevaa


(1) Mitokondriaalinen SIRT4 deasetyloi MCD entsyymin sen K206 -lysiinin ja vaimentaa entsyymiaktiivisuutta. Entsymin  rakenteen lysiinin K206 asetylaatio taas aktivoi sen. Aktivaatiosta taas seuraa AsetylCoA- muodostusta ja hiilidioksidia. 

MalonyyliCoA dekarboksylaasista MDC  sitaatti netistä:
MCD vaatii 8 posttranslationaalista modifikaatiota ja niistä viimeinen on lysiinin  K472 asetylaatio, mikä aktivoi  sen. 
SIRTUIINI 4  voi taas mitokondriasssa deasetyloida tämän K472 Ac- ryhmän mikä  vaimentaa entsyymin toimintaa. 
Entsyymillä kuitenkin on muitakin lokalisoitumisia kuten peroksisomi ja sytoplasma, jossa  sillä on lyhemmät isoforminsa toimimassa.
 Malonihappoa tuottuu peroksisomeissa parittomien pitkien  dihappojen oksidaatiosta päätevaiheessa, (mutta suurin osa menee kuitenkin lopulta  suksinyylitiehen sitruunahappokiertoon  eikä malonyylitiehen). Siis  vain osa menee   propionyylivaiheesta   akrylyyli CoA- muodon kautta , sitten tulee 3-OH-propionihappoa. sitten malonyylisemialdehydiä ja siitä MDC-entsyymillä asetylCoA ja hiilidioksidia.

MalonylCoA Decarboxylase MCD 


Malonyl-CoA decarboxylase (which can also be called MCD and malonyl-CoA carboxyl-lyase) is found from bacteria to humans, has important roles in regulating fatty acid metabolism and food intake, and it is an attractive target for drug discovery. It is an enzyme associated with Malonyl-CoA decarboxylase deficiency. In humans, it is encoded by the MLYCD gene.
Its main function is to catalyze the conversion of malonyl-CoA into acetyl-CoA and carbon dioxide. It is involved in fatty acid biosynthesis. To some degree, it reverses the action of Acetyl-CoA carboxylase.
  • Structure
MCD presents two isoforms which can be transcribed form one gene: a long isoform (54kDa), distributed in mitochondria, and a short isoform (49kDa) that can be found in peroxisomes and cytosol. The long isoform includes a sequence of signaling towards mitochondria in the N-terminus; whereas the short one only contains the typical sequence of peroxisomal signaling PTS1 in the C-terminus, also shared by the long isoform.
MCD is a protein tetramer, an oligomer formed by a dimer of heterodimers related by an axis of binary symmetry with a rotation angle of about 180 degrees. The strong structural asymmetry between the monomers of the heterodimer suggests a half of the sites reactivity, in which only half of the active sites are functional simultaneously. Each monomer contains basically two domains:
  • The N-terminus one, which is involved in oligomerization and has a helical structure of eight helixes organised as a bundle of four antiparallel helixes with two pairs of inserted helixes.
  • The C-terminus one is where malonyl-CoA catalysis takes place and which is present in GCN5- Histone acetyiltranferase family. It also includes a cluster of seven helixes.
However, the binding site for malonyl-CoA in MCD presents a variation with respect to their homologous: the center of the binding site has a glutamic residue instead of a glycine, acting as a molecular lever in the substrate releasing.
As said before, MCD presents a half of the sites reactivity, due to the fact that each heterodimer has two different structural conformations: B state (bound), in which the substrate is united; and U conformation (unbound), where the substrate union isn't allowed. According to this, the half of the sites mechanism might present a consumption of catalytic energy. Nevertheless, the conformational change produced in a subunit when changing from the B state to the U state (which produces the release of the product) coincides with the formation of a new union site in the active site of the neighbour subunit when changing from the U stat to B state. As a result, the conformational changes synchronised in the pair of subunits facilitates the catalysis despite the reduction of the number of available active sites.
Each monomer of that structure exhibits a large hydrophobic interface with the possibility to form an inter subunit disulfide bridge. Heterodimers are also interconnected by a small C-terminus domain interface, where a pair of cysteines is properly disposed. The disulfide bonds gives to MCD the capability to form a tetrameric enzyme linked by inter subunits covalent bonds in the presence of oxidants such as hydrogen peroxide.
    • Processing and post-translational modifications
Malonyl-CoA decarboxylase is firstly processed as a pro-protein or proenzyme, in which the transit peptide, whose role is to transport the enzyme to a specific organelle (in this case the mitochondria), comprises the first 39 amino acids (beginning with a methionine and ending with an alanine). The polypeptide chain in the mature protein is comprised between amino acid 40 and 493.
In order to turn into an active enzyme, MCD undergoes 8 post-translational modifications (PTM) in different amino acids. The last one, which consists of an acetylation in the amino acid lysine in position 472, activates malonyl-CoA decarboxylase activity.
Similarly, a deacetylation in this specific amino acid by SIRT4 (a mitochondrial protein) represses the enzyme activity.
Another important PTM is the formation of an interchain disulfide bond in the amino acid cysteine in position 206, which may take place in peroxisomes, as the cytosolic and mitochondrial environments are too reducing for this proces
    • Gene: MLYCD
The malonyl-CoA decarboxylase gene (MLYCD) is located in chromosome 16 (locus: 16q23.3).[2] This gene has 2 transcripts or splice variants, one of which encodes MCD (the other doesn’t encode any protein). It has also 59 orthologues, 1 paralogue and it is associated with 5 phenotypes.[3]
MLYCD is strongly expressed in heart, liver and some other tissues like kidney. This gene is also weakly expressed in many other tissues such as brain, placenta, testis, etc.[1][4][5]
    • Functions
The enzyme malonyl-CoA decarboxylase (MCD) functions as an indirect via of conversion from malonic semi aldehyde to acetyl-CoA in peroxisomes. This is due to the fact that the beta oxidation of long chain fatty acids with an odd number of carbons produces propionyl-CoA. Most part of this metabolite is transformed into succinyl-CoA, which is the precursor of the tricarboxylic acid cycle. The major alternative route by which the propionyl-CoA is metabolized is based on its conversion to acrylyl-CoA. After that, it is converted to 3-hydroxy propionic acid and finally to malonic semi-aldehyde. As soon as malonic semi aldehyde is produced, it is indirectly transformed into acetyl-CoA. This conversion has been detected only in bacteria,[6] in the other natural kingdoms there is no scientific evidence to prove it.[7]
Malonyl-CoA is an important metabolite in some parts of the cell. In peroxisomes, the accumulation of this substance causes malonic aciduria, a highly pathogenic disease. To avoid it malonyl-CoA decarboxylase (MCD) converts malonyl-CoA into acetyl-CoA through the following reaction:  
In peroxisomes, it is proposed that this enzyme could be involved in degrading intraperoxisomal malonyl-CoA, which is produced by the peroxisomal beta oxidation of odd chain length dicarboxylic fatty acids (odd chain length DFAs). While long and medium chain fatty acids are oxidized mainly in the mitochondria, DFAs are oxidized primarily in peroxisomes, which degrade DFAs completely to malonyl-CoA (in the case of odd chain length DFAs) and oxalyl-CoA (for even chain length DFAs). The peroxisomal form of MCD could function to eliminate this final malonyl-CoA.
In the cytosol, malonyl-CoA can inhibit the entrance of fatty acids into the mitochondria and it can also act as a precursor for the fatty acids synthesis.
Cytoplasmic MCD is thought to play a role in the regulation of cytoplasmic malonyl-CoA abundance and, therefore, of mitochondrial fatty acid uptake and oxidation.[8] It has been observed that MCD mRNA is most abundant in cardiac and skeletal muscles, tissues in which cytoplasmic malonyl-CoA is a strong inhibitor of mitochondrial fatty acid oxidation and which derive significant amounts of energy from fatty acid oxidation.

Malonyl-CoA also plays an important role inside the mitochondria, where it is an intermediary between fatty acids and acetyl-CoA, which will be a reserve for the Krebs cycle.
When Malonyl-CoA  acts  as an intermediary between fatty acids and acetyl-CoA in the mitochondria,   mitochodnrial MCD is believed to participate in the elimination of the residual malonyl-CoA, so that acetyl-CoA can enter the Krebs cycle.
MCD also plays a role in the regulation of glucose and lipids as fuels in human tissues. Malonyl-CoA concentrations are crucial in the intracellular energetic regulation and the production or degradation of this metabolite delimits the use of glucose or lipids to produce ATP.
    • Pathology
The diseases related with MCD can be caused by its mislocalization, mutations affecting the gene MLYCD, its accumulation in peroxisomes and, mainly, its deficiency.
MCS deficiency is a rare autosomal disorder that is widely diagnosed by neonatal screening and it is caused by mutations in MLYCD. It causes many symptoms: brain abnormalities, mild mental retardation, seizures, hypotonia, metabolic acidosis, vomiting, excretion of malonic and methylmalonic acids in urine, cardiomyopathies, and hypoglycemia. More rarely, it can cause rheumatoid arthritis too.
In peroxisomes, the accumulation of MCD substance also causes pathological symptoms, which are similar to MCS deficiency: malonic aciduria, a lethal disease in which patients (normally children) have delayed development and can suffer from seizures, diarrhoea, hypoglycaemia and cardiomyopathy, as well.
Others symptoms caused by an altered action of MCD can be abdominal pain and chronic constipation.[9]
    • Localization
Malonyl-CoA decarboxylase is present in the cytosolic, mitochondrial and peroxisomal compartments. MCD is found from bacteria to plants.[10][11] In humans, MCD has been identified in heart, skeletal tissue, pancreas and kidneys. In rats, MCD has been detected in fat, heart and liver.[12]
    • Enzyme regulation
Because the formation of interchain disulfide bonds leads to positive cooperativity between active sites and increases the affinity for malonyl-CoA and the catalytic efficiency (in vitro), MCD activity doesn't need the intervention of any cofactors or divalent metal ions.[13]
    • Medical applications
MCD is involved in regulating cardiac malonyl-CoA levels, inhibition of MCD can limit rates of fatty acid oxidation, leading to a secondary increase in glucose oxidation associated with an improvement in the functional recovery of the heart during ischaemia/reperfusion injury. MCD is a potential novel target for cancer treatment.

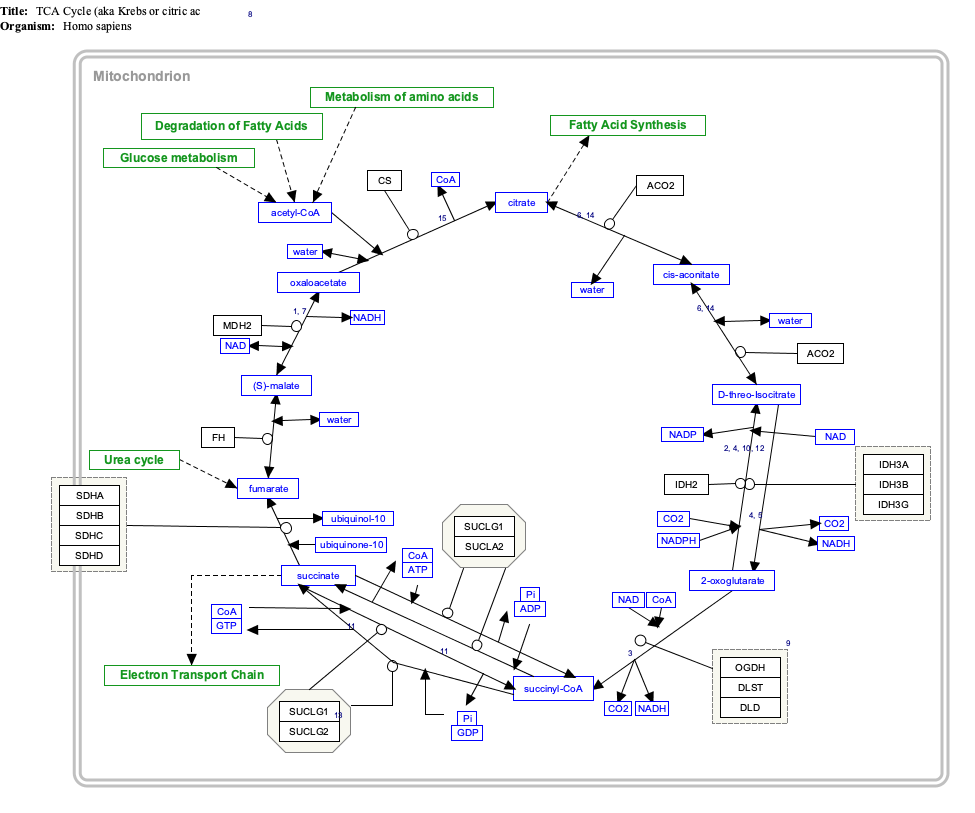
Sitruunahappokierto ja siinä ilmenevät dihapot

Joka ihmisen  aineenvaihdunnassa on sitruunahappokierto.
Sitruunahappiokiertoa tapahtuu tehokkaimmin mitokondriassa , joka on ihmisen energialaitos ja tuotaa energiapakkauksia ATP, myös  hieman metabolista vettä ja hiilidioksidia, joka sitten  lopulta hengitetään keuhkoista.  Samalla  myös  energiaa  saadaan talteen koentsyymiketjun jäsenten syklien avulla.  Lisäksi tuottuu   aminohappoakin.  kun  ammoniumia sitoutuu  orgaanisiin happoihin joita syklissä kiertää jäseninä. Sykli otaa myös vastaan   rasvoista , hiilihdyrtaateista ja aminohapoista pilkkoutuvaa hiiliketjua.

Perusjäsenet: 
https://fi.wikipedia.org/wiki/Sitruunahappokierto

Ruotsalainen teksti  löytyy myös: Siinä näkyy hyvin miten NAD+ ja NADH  myös liittyvät tähän syklinäkymään. NAD+ on nikotinamidiadeniinidinukleotidi koentsyymi , jota moni entsyymi tarvitsee apuna.

otan siitä kuvan:


Lisäksi englantilaisessa kaavassa näkyy  tapahtumat hyvin:
https://upload.wikimedia.org/wikipedia/commons/1/14/TCACycle_WP78.png

Azelaiinihappo ja Pityriasis versicolor , tyrosinaasivaikutus

Azelaic acidhttp://www.hmdb.ca/metabolites/HMDB0000784
DescriptionAzelaic acid (AZA) is a naturally occurring saturated nine-carbon dicarboxylic acid (COOH (CH2)7-COOH). It possesses a variety of biological actions both in vitro and in vivo. Interest in the biological activity of AZA arose originally out of studies of skin surface lipids and the pathogenesis of hypochromia in pityriasis versicolor infection. Later, it was shown that Pityrosporum can oxidize unsaturated fatty acids to C8-C12 dicarboxylic acids that are cornpetitive inhibitors of tyrosinase in vitro. Azelaic acid was chosen for further investigation and development of a new topical drug for treating hyperpigmentary disorders for the following reasons: it possesses a middle-range of antityrosinase activity, is inexpensive, and more soluble to be incorporated into a base cream than other dicarboxylic acids. Azelaic acid is another option for the topical treatment of mild to moderate inflammatory acne vulgaris. It offers effectiveness similar to that of other agents without the systemic side effects of oral antibiotics or the allergic sensitization of topical benzoyl peroxide and with less irritation than tretinoin. Azelaic acid is less expensive than certain other prescription acne preparations, but it is much more expensive than nonprescription benzoyl peroxide preparations. Whether it is safe and effective when used in combination with other agents is not known. (PMID: 7737781 , 8961845 ).
Tyrosinaasin kartasta tyrosiinin aineenvaihdunnassa
Neuromelaniinigranulat
 https://www.nature.com/articles/srep37139

tisdag 6 februari 2018

Ps.89:15,16

6.2.2018,10:18.Sana psalmista 86:15,16.
(A Maskil of Ethan the Ezrahite) Blessed are the people who know the festal shout, who walk , o Lord, in the light of thy countenance;who exult in thy name all the day, and extol thy righteousness.

tisdag 25 oktober 2016

Tartraatti eli viinihappo E334

 Viinihaposta löytyy suomalainen Wikipedia teksti
https://fi.wikipedia.org/wiki/Viinihappo


http://www.hmdb.ca/metabolites/HMDB00956
 http://tillsatsappen.se/antioxidationsmedel/e334-l-vinsyra/
 2,3-Dihydroxybutanedioate
Weinsäure, Vinsyra, viinihappo , Tartrate, Threaric acid
2,3-Dihydroxybutanedioic acid
2,3-Dihydroxysuccinic acid

Tartaarihappoa on monissa kasveissa, erityisesti viinirypäleissä ja tamarindissa ja se on eräs viinissä esiintyvistä päähapoista.  Sitä lisätään muihin ruokiin happamen maun antajaksi ja sitä käytetään antiioksidantin tavoin. Tartaarihapon suoloja sanotaan tartraateiksi. Se on dikarboksyylihapon dihydroksijohdannainen, eli siinä on kaksi OH-ryhmää rungossa ja kummassakin päädyssä-COOH ryhmä.
Tartaarihappo on lihasmyrkky  ja se estää malaatin ( kehon oman dikarboksyylihapon)  tuotantoa ja suurina annoksina aiheuttaa halvausta ja kuolemaa. On rekisteröity ihmisen  pienin fataali annos ja se on 12 grammaa. Tästä huolimatta  sitä sisällytetään  moniin ruokiin, erityisesti happamelta maistuviin makeisiin. Sille on raja-arvonsa.
Elintarvikkeen lisäaineena tartaarihapolla on numero E334. Sen suolat tartraatit ovat myös lisäaineita ja niitä käytetään antioksidantteina tai emulsiota muodostavina  aineina.
 http://tillsatsappen.se/antioxidationsmedel/e354-kalcium-l-tartrat/
 http://www.fao.org/3/a-y5488s/AC300e07.htm
Luonnollinen tartaarihappo on kiraalinen, mikä tarkoittaa, että sen molekyylit eivät ole " päällekkäin asetettavissa"  peilikuvina. Se on hyödyllistä raaka-ainetta orgaanisessa kemiassa syntetisoitaessa muita kiraalisia molekyylejä.
 Tartaarihapon luonnollinen muoto on  levo-(+) -tartaarihappo tai dextrotartaarihappo. Enantiomeeristä ( peilikuvamuotoa)  levotartaarihappoa tai D-(-)- tartaarihappoa ja akiraalista  muotoa, mesotartaarihappoa, voidaan tehdä keinotekoisesti.
Tartaarihapolla katsotaan olevan merkitystä munuaiskivimuodostuksen ehkäisyssä . Suurimman  osan  ihmisravinnon tartaarihaposta  arveltavasti  käyttävät bakteerit aineenvaihduntaansa  mahasuolikanavassa- ensisijaisesti paksusuolessa. Vain 15- 20% syödystä tartaarihaposta erittyy muuttumattomana virtsaan.

  •  Tartaric acid is a white crystalline organic acid. It occurs naturally in many plants, particularly grapes and tamarinds, and is one of the main acids found in wine. It is added to other foods to give a sour taste, and is used as an antioxidant. Salts of tartaric acid are known as tartrates. It is a dihydroxy derivative of dicarboxylic acid. Tartaric acid is a muscle toxin, which works by inhibiting the production of malic acid, and in high doses causes paralysis and death. The minimum recorded fatal dose for a human is about 12 grams. In spite of that, it is included in many foods, especially sour-tasting sweets. As a food additive, tartaric acid is used as an antioxidant with E number E334, tartrates are other additives serving as antioxidants or emulsifiers. Naturally-occurring tartaric acid is chiral, meaning that it has molecules that are non-superimposable on their mirror-images. It is a useful raw material in organic chemistry for the synthesis of other chiral molecules. The naturally occurring form of the acid is L-(+)-tartaric acid or dextrotartaric acid. The mirror-image (enantiomeric) form, levotartaric acid or D-(-)-tartaric acid, and the achiral form, mesotartaric acid, can be made artificially. Tartarate is believed to play a role in inhibiting kidney stone formation. Most tartarate that is consumed by humans is metabolized by bacteria in the gastrointestinal tract -- primarily in the large instestine. Only about 15-20% of consumed tartaric acid is secreted in the urine unchanged.
Suomessa viinihappoa kätyetään myös säilöntään ja apteekin viinihappo annokset on netissä mainittu.  ne ovat mielstäni aika isoja, vaikka  ohja ja laimennos on ohessa. Informaatio  lisäaineesta ei ilmaise mitään vaaraa tartraatista, jos sitä hurahtaa ylimääriä hilloon säilöttäessä. Säilöntään on muitakin vaihtoehtoja.Sitäpaitsi puolukka on omalla hapollaakin hyvin säilyvää laatua. Allaolevassa sokerin lisä on mielestäni aivan liian hurjaa. Miltei 50% olisi vain sokeria. Silloinhan puolukan terveellinen merkitsy katoaa.
http://www.apteekkini.fi/VIINIHAPPO-50-g-tai-100-g
Otan sitaatin esim puolukan säilönnästä apteekin ohjeen mukaan.
SITAATTI Viinihappoa käytetään marjojen ja hedelmien säilönnässä happamuuden säätöaineena (E334).

Koostumus
Viinihappo (Acid. tartar.)

Käyttötapa
Käytetään happamuudensäätöaineena
  • marja- ja hedelmäsäilykkeissä enintään 2 g/kg
  • marmeladeissa, hilloissa ja hyytelöissä enintään 5 g/kg
  • mehuissa enintään 0,5 g /kg.
Viinihappo liuotetaan pieneen määrään vettä ja lisätään valmiiseen säilykkeeseen.

Puolukkamehu
6 kg puolukoita
3 l vettä
3 tl viinihappoa
2-3 kg sokeria

Puolukat jauhetaan tai survotaan. Päälle kaadetaan kylmä vesi ja liuotettu viinihappo, joka sekoitetaan hyvin puolukoihin. Seos saa seistä kannen alla pari kolme päivää, kuitenkin seosta välillä sekoittaen. Mehu siivilöidään, lisätään sokeri ja hämmennetään kunnes sokeri sulaa. Mehu kaadetaan pulloihin, jotka suljetaan tiiviisti ja säilytetään kylmässä paikassa. Mehun voi valmistaa myös ilman sokeria.

Pakkauskoko  Jauhe 50 g ja 100 g

Valmistaja/markkinoija: Oriola Oy

Viinihappoa käytetään marjojen ja hedelmien säilönnässä happamuuden säätöaineena (E334).

Koostumus
Viinihappo (Acid. tartar.)

Käyttötapa
Käytetään happamuudensäätöaineena
  • marja- ja hedelmäsäilykkeissä enintään 2 g/kg
  • marmeladeissa, hilloissa ja hyytelöissä enintään 5 g/kg
  • mehuissa enintään 0,5 g /kg.
Viinihappo liuotetaan pieneen määrään vettä ja lisätään valmiiseen säilykkeeseen.

Puolukkamehu
6 kg puolukoita
3 l vettä
3 tl viinihappoa
2-3 kg sokeria

Puolukat jauhetaan tai survotaan. Päälle kaadetaan kylmä vesi ja liuotettu viinihappo, joka sekoitetaan hyvin puolukoihin. Seos saa seistä kannen alla pari kolme päivää, kuitenkin seosta välillä sekoittaen. Mehu siivilöidään, lisätään sokeri ja hämmennetään kunnes sokeri sulaa. Mehu kaadetaan pulloihin, jotka suljetaan tiiviisti ja säilytetään kylmässä paikassa. Mehun voi valmistaa myös ilman sokeria.

Pakkauskoko  Jauhe 50 g ja 100 g

Valmistaja/markkinoija: Oriola Oy

onsdag 23 november 2011

Onko uremisissa neurotoksiineissa myös dikarboksyylimuotoisia?

Kidney Int Suppl. 2001 Feb;78:S77-83.
Endogenous guanidino compounds as uremic neurotoxins.
De Deyn PP, D'Hooge R, Van Bogaert PP, Marescau B.
Source

Department of Neurology, Middelheim Hospital, Wilrijk-Antwerp, Belgium.
Abstract

Epileptic and cognitive symptomatologies are among the most typical manifestations of uremic encephalopathy. Several guanidino compounds (GCs) may play an important role in the etiology of uremic encephalopathy. Four GCs appeared to be highly increased as well in serum, cerebrospinal fluid, and brain of uremic patients, whereas the levels of other metabolically relevant GCs were not or only moderately increased and others were even decreased. These highly increased compounds or "uremic" GCs are creatinine (CTN), guanidine (G), guanidinosuccinic acid (GSA), and methylguanidine (MG). All four compounds were shown to be experimental convulsants in brain concentrations similar to those found in uremic brain. We have described a possible mechanism for the contribution of GCs to uremic hyperexcitability, referring to the in vitro effects of uremic GCs on inhibitory and excitatory amino acid receptors. The excitatory effects of uremic GCs on the central nervous system may be explained by the activation of N-methyl-D-aspartate (NMDA) receptors by GSA, concomitant inhibition of GABA(A) receptors by uremic GCs, and other depolarizing effects. These effects might also indicate the putative contribution of uremic GCs to the etiology of uremic encephalopathy.

PMID:
11168988
[PubMed - indexed for MEDLINE]
  • SIIS löytyyhän sieltä meripihkahapon guanidinojohdannainen.

Isovalthine, kaava

Indikaattoriaine?

Hypotyreoosi tiedetään syyksi ihmisellä.
Olisiko vielä b12-vajekin, vai pelkkä aineenvaihdunnallinen vaje?
http://www.guidechem.com/dictionary/2134-55-6.html

Päivitys 2011-11-23

tisdag 22 november 2011

Isovalthine, biosynteesin pohdinta

J Anim Physiol Anim Nutr (Berl). 2005 Feb;89(1-2):1-10. Mammalian isovalthine metabolism.

Source

Institute of Food, Nutrition and Human Health, Massey University, Palmerston North, New Zealand. K.J.Rutherfurd@massey.ac.nz

Abstract (Suomennosta)

Isovalthine is a branched-chain sulphur amino acid, which has been found in the urine of normal cats.

ISOVALTIINI on haaraketjullinen rikkiä sisältävä aminohappo, jota kissojen virtsassa on normaalisti.

The concentrations of isovalthine in the urine of healthy adult cats are approximately 24-66 micromol/l and are not affected by the gender of the cat.

Isovaltiinipitoisuus terveen aikuiskissan pissassa on noin 24- 66 mikromoolia litrassa sukupuolesta riippumatta.

Isovalthinuria can be induced in other species (rats, rabbits, guinea-pigs, humans, dogs) following the administration of certain inducing agents such as some hypocholesterolaemic agents, bile acids, hormones or cholesterol precursors.

ISOVALTINURIAA voi indusoitua muissakin lajeissa: rotassa, kaniinissa, hamsterissa, ihmisissä, koirissa- jos niille annetaan joitain tiettyjä aineita kuten eräitä hypokolesterolemisia aineita, sappihappoja, hormoneita tai kolesterolin esiasteita.

The method of induction of isovalthinuria was studied extensively during the 1960s, and efforts were made to understand its biosynthesis.

ISOVALTIININ induktiomenetelmiä tutkittiin laajasti 1960 luvulla, kun koetettiin saada sen biossynteesi selville.

However, although the origin of the sulphur atom in isovalthine was shown to be from cysteine or methionine, the origin of the carbon skeleton remains unknown.

Sen hiiliketjun alkuperä jäi selvittämättä, vaikka saatiinkin selville rikkimolekyylin olevan peräisin cysteiinistä tai metioniinista.

Interest in isovalthine metabolism was generated in part because it was reportedly found in the urine of patients with hypercholesterolaemia.

Asiaan loi mielenkiintoa havainto isovaltiinista hyperkolesterolemisten potilaitten virtsassa.

The validity of this finding however, was brought into question following reports that administration of the drug Bromural (alpha-bromoisovalerylurea), to humans results in the generation of compounds which break down to yield isovalthine following acid hydrolysis.

Havainnon merkitys kuitenkin kyseenalaistettiin, koska Bromural niminen lääkeainekin hajosi yhdistyksiinsä happohydrolyysissa tuottaen isovaltiinia.

This article presents a review and discussion of the experimental data on isovalthine metabolism.

Tässä katsauksessa esitetään ja pohditaan isovaltiinin aineenvaihdunnan kokeellisia tietoja.

PMID:
19112709
[PubMed - indexed for MEDLINE]
(Kts.blogin artikkeli. isovaltiinia esiintyy hypotyreoottisilla henkilöillä virtsassa. )

lördag 10 april 2010

Dokosanoic acid, omega-oxidation

Docosanoic Acid  ,( Behenic acid)      Omega-oxidation
http://www.jlr.org/cgi/reprint/M400510-JLR200v1.pdf

Kaikkien pidempien rasvahappojen kuvia
http://www.gentaur.com/fatty_acids.htm

Nämä siis eivät ole valmiiksi dikarboksyylihappomuodossa, mutta voivat ( omega) oksidoitua siihen suuntaan.

C22:0 , docosanoic acid omega-oksidaatiossa maksan mikrosomeissa NADPH:n läsnäollessa tuotti omega- -hydroksy-C22: 0 eli OH-rasvahappoa
ja myös dikarboksyylihappoa C22:0-DCA.

C22:0-DCA , docosane dioic acid.

Dikarboksyylihapon asyyliglysiini, suberylglysiini

ACYLGLYCIN

Suberyyliglysiini_ Suberylglycin
LÄHDE:
http://www.hmdb.ca/metabolites/HMDB00953
2005-11-16 15:48:42
Update Date 2009-07-07 13:48:13
Accession Number HMDB00953
Secondary Accession Numbers Not Available
Common Name Suberylglycine
  • Suberyyliglysiini kuuluu asyyliglysiineihin.
Description Suberylglycine is an acyl glycine.
  • ASYYLIGLYSIINIT ovat normaalisti pienimääräinen rasvahappoaineenvaihdunnan metaboliitti.
Acyl glycines are normally minor metabolites of fatty acids.

  • Kuitenkin synnynnäisessä aineenvaihdunnallisessa virheessä voi asyyliglysiinien eritys olla lisääntynyt.
However, the excretion of certain acyl glycines is increased in several inborn errors of metabolism.

  • Tietyissä tapauksissa näitten aineenvaihduntatuotteiden mittaamisella kehonesteistä voidaan diagnosoida mitokondriaalisen rasvahappojen betaoksidaation häiriöitä.
In certain cases the measurement of these metabolites in body fluids can be used to diagnose disorders associated with mitochondrial fatty acid beta-oxidation.

  • Asyyliglysiineitä tuottuu entsyymivaikutuksesta: entsyymi glysiini N-asétyylitransferaasi (EC 2.3.1.13) katalysoi reaktiota
asyyliCoA( aktivoitunut rasvahappo) + N-asetyyliglysiini.

Acyl glycines are produced through the action of glycine N-acyltransferase (EC 2.3.1.13) which is an enzyme that catalyzes the chemical reaction:
acyl-CoA + glycine                       CoA + N-acylglycine

  • Suberyyliglysiini on dikarboksyylihappo. Se muodostuu konjugoitumalla kun entsyymi glysiini-N-asetylaasi on katalysoimassa.
Suberylglycine is a dicarboxylic acid. It is formed by glycine-N-acylase catalyzed conjugation (PMID 947635).
  • Tätä molekyyliä voidaan hyödyntää keskipitkien rasvahappojen CoA dehydrogenaasi-entsyymin vajeen  diagnostiikassa
It can be used for the diagnosis of hereditary medium-chain acyl-CoA dehydrogenase deficiency (PMID 2775902).
  • Käytetyt synonyymit suberylglysiinille
Synonyms
1.Suberylglycin
2.Suberylglycine
  • IUPAC nimitys
Chemical IUPAC Name 8-[(carboxymethyl)amino]-8-oxo-Octanoic acid
  • Kemiallinen kaava
Chemical Formula C10H17NO5

fredag 9 april 2010

Omega-oksidaatio dikarboksyylihapoilla

  • Rasvahappojen oksidaatioista tunnetaan beetaoksidaatio, alfaoksidaatio ja viimeksi on havaittu omega-oksidaatio
www.phmd.pl/fulltxthtml.php?ICID=887784
The last known type of FA oxidation is ω-oxidation.

* OMEGA-oksidaatio on kolmevaiheinen ja se johtaa dikarboksyylihappojen muodostumiseen.

(Kommentti: Eräitten lyhyehköjen dikarboksyylihappojen muodostuminen on tärkeä, koska ne ovat rakenteita, jotka vastaavat sitruunahapposyklin jälkipuoliskon perusmodulista ja täten energian saamisen jatkuvuudesta. Ne muodostuvat syklin aikana ja eräät muodot eivät päässe ulos mitokondriasta).

It is a three-step process resulting in the formation of dicarboxylic acids.
  • Ensiksi monokarboksyylinen rasvahappo (R1-COOH) omega- hydroksyloituu ja tätä katalysoi mono-oxygenaasi, joka on liittyneenä solun endoplasmiseen verkostoon (ÉR) .
First, monocarboxylic fatty acid undergoes w-hydroxylation catalyzed by mono-oxygenase associated with the endoplasmic reticulum.
  • Seurauksena muodostunut omega-OH- monokarboksyylihappo ja se alkaa oksidoitua sytosolissa, solulimassa, entsyymillä, joka on pitkäketjuisten alkoholien ja aldehydien dehydrogenaasi. Näin muodsotuu omega-keto-monokarboksyylihappo ja lopulta on molekyylin molemmissa päissä karboksyylit (COOH) ja lopputuote on dikarboksyylihappo ( HOOC-Rn-COOH)
The resulting ω-hydroxymonocarboxylic acid is oxidized by cytosolic long-chain alcohol and aldehyde dehydrogenases to ω-ketomonocarboxylic acid and, finally, dicarboxylic acid.
  • Muodostunut dikarboksyylihappo voi aktivoitua mikrosomaalisella dikarboxylyyli-CoA-syntetaasilla.
Dicarboxylic acids can be activated by a microsomal dicarboxylyl-CoA synthetase
  • Aktivoitunut dikarboksyylihappo käy läpi peroksisomaalisen beeta-oksidaation molemmista päistään.
and undergo peroxisomal β-oxidation from both ends [25,77].

  • LOPPUTUOTETTA:
  • LISÄYS:
Leighton et al. tekivät varhain tutkimuksiaan ja osoittivat, että koe-eläimen maksasolun peroksisomeissa on dikarboksyylihappojen beeta-oksidaation ensisijainen tuote etikkahappoa ja sitä eritetään nopeasti pois solusta.
Kehossa tällä tavalla vapautunut etikkahappo (asetaatti) oksidoituu hiilidioksidiksi CO2 ja vedeksi H2O muissa kudoksissa kuten aivoissa ja sen takia sitä voi pitää kolmantena ketoniaineena asetoasetaatin ja 2- hydroxyvoihapon lisäksi. (acetate , the third ketone body after acetoacetate and 3-hydroxybutyrate).

Dikarboksyylihapoista yleistä

Dikarboksyylihapot ovat rasvahappo-oksidaation sivutuotteita. ja niitten rakenne on
joko yksinkertainen suora- tai haaraketjuinen ( BCFA)
tai kompleksi kuten dikarboksyylihapot ja alkyylisivuketjuiset alkyyli-itaconaatit ym.

Kovin isokokoisia dihappoja 
ei tule kysymykseen ihmisen kehossa.

Kasvilipideistä esimerkki. Sumac puun lipideissä("Japan wax") on C20, C21, C22, C23 dikarboksyylihappoja tavallisten rasvahappojen ohella.maaliäljyjen kuivuessa.

Thapsic acid (n= 14) esiintyy Thapsia garganica Umbelliferae, Välimeren alueen myrkyllisessä porkkanassa, deadly carrot root.

Brassylic acid( n= 11) muodostuu erukahaposta ( erucic acid) päin.

Välimeren alueen pähkinöistä tunnetaan 26 erilaista happoa, pekaanipähkinässä niitä on 2 ja maapähkinässä 8 % käösittäen 18 eri lajia ja ketjun hiilimäärä vaihtelee 5- 22 hiilen skaalassa.

Ison molekyylikoon ( C > 20) dikarboksyylihappoja on suberiinissa, jota sijaitsee kasvien pinnalla ulkoisessa kuoressa ( outer bark) ja juuren epidermiksessä. Kasvisvahan SUBERIININ läsnäolon diagnostinen merkki on C16- C26 kokoiset omega-dioic acids dikarboksyylihapot.
Koko suberiinista on C18:1 ja C18: 2 happoja 24- 45 %.
Niitä esiintyy matalapitoisesti kasvien CUTIN- kerroksessa ( alle 5%).

Ensimm'inen alleeninen dikarboksyylihappo nimitettiin glutine acid- nimellä, glutiinihapoksi ( 2,3- pentadiene dioic acid) ja se eristettiin lepästä Alnus Glutinosa, Betulaceae.

Meren bakteereistä mainittakoot, että ne jotka ovat erittäin lämmönkestäviä, omaavat paljon dikarboksyylihappoja rakenteessaan. ( hypertermofiilit bakteerit) .
Archeon- lajeista on löydetty dioic fatty acids C16- C22.
Cyanobacteria-lajeista on löydetty lyhyt- ja keskipitkäketjuisia dikarboksyylihappoja ( dioic acid C up to 11).

Kasveilla on oma ihmisen arakidonihappoa ja eikosanoidikaskadia vastaava järjestelmä kasvinvaurioitten parantumiseen! Yksi tällainen rasvahappo on nimeltään traumatic acid. Se on kertatyydyttämätön (MUFA) dikarboksyylihappo ( monounsaturated dioic acid) . Tämä on biologisesti aktiivi kasvimolekyyli: 10E-dodeca-1,12-dicarboxylic acid. Se on vaikutukseltaan vahvasti parantava ja sen läheiset solut kasvin stimuloituvat jakaantumiseen. Se johtuu linoli (C-18:2) ja linoleenihappo( C18:3) hydroperoxideista käsin, sen jälkeen kun ne ovat muuttuneet oxo-rasvahapoiksi.

Sen sijaan PUFA - hapot ovat epätavallisia kasvin cuticulassa; on raportoitu joillain kasveilla pintakomponenttien vahoista tai polyestereistä: di-unsaturated dicarboxylic acids.

Eräs linolihappojohdannainen, octa-deca-C6, C9--diene- 1,18- dioate löytyy Arabidopsiksesta, Brassica napuksesta, cuticulasta.

Vuonna 1934 havaittiin omega- oksidaation tuottavan dikarboksyylihappoja rasvahappojen oksidaation aikana.

Näitä ilmeestyi virtsaankin, jos oli annettu tricapriinia tai triundecyliniä.
OMEGA-OKSIDAATIO vaatii maksassa happea, NADPH ja sytokromia P450.
Dikarboksyylihappoja alkaa ilmetä nälkätilassa ja diabeteksessa. Jopa 15 % palmitiinihaposta C16:0 alkaa muodostaa dikarboksyylimuotoa, siis  molempiin päihin COOH- ryhmä ja molemmat päädyt betaoksidoituvat .

Alternatiivi lipidisubstraatti parenteraaliseen ravitsemukseen ? Tällaisia  näyttää pohditun.

Tästä sitten onkin saatu ajatus, että parenteraalisessa nutritiossa voisi valmiit dikarboksyylihappomuodot olla sellainen välittömän energian lähde. koska ne ovat
1) vesiliukoisia,
2) menevät beta-oksidaatioon
3) eivät indusoi ketogeneesiä
4) päinvastoin edistävät glykoneogeneesiä.

Sitten ajateltiin, että tällaiseksi parenteraaliseski lipidiksi soveltuisi sebasiinihapon mineraalisuolamuoto, sebacic acid ( C10) tai lauriinihapon mineraalisuolat ( lauric acid C12) . Muta nykyään ollaan päädytty tutkimaan sellaisia triglyseridejä, joissa olisi näitä rasvahappoja.
Oli havaittu että palmitiinihapon ( palmitic acid C16) dikarboksyylihappojohdannaiset olivat edullisia aineenvaihdunnalle ja estivät vakavan kardiovaskulaarisen taudin pahenemista.


http://www.answers.com/topic/dicarboxylic-acid
Common name IUPAC name Chemical formula Structural formula
Oxalic acid ethanedioic acid HOOC-COOH Oxalic acid.png
Malonic acid propanedioic acid HOOC-(CH2)-COOH Malonic acid structure.png
Succinic acid butanedioic acid HOOC-(CH2)2-COOH Succinic acid.png
Glutaric acid pentanedioic acid HOOC-(CH2)3-COOH Glutaric acid.png
Adipic acid hexanedioic acid HOOC-(CH2)4-COOH Adipic acid structure.png
Pimelic acid heptanedioic acid HOOC-(CH2)5-COOH Pimelic acid.png
Suberic acid octanedioic acid HOOC-(CH2)6-COOH Suberic acid.png
Azelaic acid nonanedioic acid HOOC-(CH2)7-COOH Azelaic acid.svg
Sebacic acid decanedioic acid HOOC-(CH2)8-COOH Sebacic acid.png
Phthalic acid benzene-1,2-dicarboxylic acid
o-phthalic acid
C6H4(COOH)2 Phthalic-acid-2D-skeletal.png
Isophthalic acid benzene-1,3-dicarboxylic acid
m-phthalic acid
C6H4(COOH)2 Isophthalic-acid-2D-skeletal.png
Terephthalic acid benzene-1,4-dicarboxylic acid
p-phthalic acid
C6H4(COOH)2 Terephthalic-acid-2D-skeletal.png

Metabolisia kertyviä välituotteita MCADD taudissa.

MCADD
Kliininen kuva. MCAD:n puute on autosomissa peittyvästi periytyvä rasvahappoaineenvaihdunnan sairaus (Mc Kusick (201450)). Tauti kuvattiin ensi kertaa vuosina 1982-83 (K›lvraa ym. 1982, Rhead ym. 1983, Stanley ym. 1983).
Potilaiden beetaoksidaatio ei sairauden vuoksi kykene pilkkomaan kunnolla keskipituisia rasvahappoja (hiilirunko C6-C12).
Tästä seuraa oireita aiheuttava häiriö energiantuotossa, etenkin jos ravinnonotto on heikentynyt (paasto, ripuli, oksentelu, kuumeilu), ja usein häiriö myös ketoaineiden tuotossa. Tyypillisesti potilas alkaa voida huonosti tavallisen infektion aikana, ja lisäksi ilmaantuu poikkeavaa väsymystä ja heikkokuntoisuutta. Äkillisesti ilmenevä yleisoireinen hypoglykemia saattaa johtaa tajunnan heikkenemiseen ja lopulta jopa koomaan. Maksan toiminta häiriytyy ja sen koko voi kasvaa; seurauksena saattaa olla hepaattinen enkefalopatia. Kuvatunlaista oireilua ilmenee erityisesti 1-2-vuotiailla lapsilla, joiden hiilihydraattivarastot ovat käyttöön verrattuna pienet, ja raporttien mukaan oireet alkavatkin ilmetä keskimäärin vuoden iässä (vaihteluväli 1 vrk - 6.5 v) (Iafolla ym. 1994, Andresen ym. 1995).
LABORATORIOLÖYDÖKSET:
Tyypillisiä laboratoriolöydöksiä ovat
  • hypoketoottinen hypoglykemia
  • suurentunut ammoniakkimäärä
  • maksaentsyymiarvojen kasvu
  • Normaali verenglukoosiarvo ei kuitenkaan sulje pois MCAD:n puutetta.
  • Virtsasta löytyy orgaanisten happojen analyysissä dikarboksyylihappoja sekä erityisesti heksanoyyli-, suberyyli- ja fenyylipropionyyliglysiiniä sekä oktanoyyli-, heksanoyyli- ja dodekanoyylikarnitiinia (Rinaldo ym. 1988, Ziadeh ym. 1995)
http://www.springerlink.com/content/b158300200j45436/
  • Veressä ja kudoksissa havaittava sekundaarinen karnitiinin puute on myös tyyppilöydös.
  • Diagnoosi varmistetaan lopullisesti MCAD-entsyymiaktiivisuuden mittauksella tai geenin mutaation osoituksella.
SAIRAUDEN HOITO
Paras hoitokeino on hypoglykemian välttäminen. Äkillisen yleisoireisen hypoglykemiakohtauksen hoitoon kuuluu suoneen annettava glukoosi.
Suun kautta annettavasta karnitiinista saattaa olla hyötyä, ja myös suonensisäistä karnitiinihoitoa käytetään (von Döbeln ym. 1988).
Infektiofokusten hoito kuuluu hyvään yleishoitoon.
MCAD:n puutteen diagnoosin varmistaminen on erittäin tärkeätä. Diagnoosin varmistuttua neuvotaan oikea ravitsemus:

  • useiden hiilihydraattipitoisten ja vähärasvaisten aterioiden nauttiminen.
  • Paastoa tulee välttää, erityisesti pienten lasten infektioiden aikana.
  • Tukihoitona käytetään suun kautta annettavaa L-karnitiinia (esim. 0.5 g/vrk) (von Döbeln ym. 1988, Holme ym. 1992, Coates 1994, Iafolla ym. 1994).
  • Myös sisarukset on tutkittava mahdollisen MCAD:n puutteen varalta.
SAIRAUDEN YLEISYYS
Vuonna 1990 MCAD:n puutteen mielenkiintoinen geneettinen tausta alkoi selvitä. Matsubara (1990) ja Yokota ym. (1990) totesivat potilailla MCAD-geenissä pistemutaation. Asemassa 985 oleva arginiini oli korvautunut glutamiinihapolla (A985G-mutaatio). Tämä valtamutaatio esiintyy nykykäsityksen mukaan 90 %:lla MCAD:n puutetta sairastavista valkoisen rodun edustajista.

lördag 28 februari 2009

Monimutkaisia dihappoja, Jäkälä -ja sienihappoja

DIACIDS (6. art). Complex dicarboxylacids. Monimutkaiset dikarboksyylihapot, alkyyli-itakonaatit

  • 2 - ALKYYLI-ITAKONAATIT (Alkyl itaconates)

ITAKONAATTI (Itaconate, itaconic acid; methylenesuccinic acid)
Metyleenimeripihkahappo

Useita dikarboksyylihappoja on sellaisiakin, joilla on alkyylisivuketju ja itakonaattiydin. Niitä on löydetty jäkälistä ja sienistä.

Filamenttisienien aineenvaihdunnallista tuotetta on metyleenimeripihkahappo, joka on juuri tätä itakonihappoa.


  • KHETOMELLIHAPPO (Chaetomellic-acids)

Näissä yhdisteissä on useita analogeja eri ketjupitoisuuksin ja eri asteisesti tyydyttämättöminä. Niitä on eristetty eri jäkälälajeista Chaetomella. Tämäntapaisten molekyylien on sanottu olevan arvokasta perustavaa molekyyliä anti-syöpälääkkeitten kehittelyyn koska niillä on vahva farnesyylitransferaasi-entsyymiä estävä vaikutus (Singh SB et al., Bioorg Med Chem 2000, 8, 571).

http://www.cyberlipid.org/images/pict268.gif

  • SERIPORIINIHAPPO (Ceriporic acids)
Vuonna 1999 löydettiin sarja uusia sieniperäisiä alkyyli- ja alkenyyli-itakonaatteja, seriporiinihappoja. Näitä löydettiin kun viljeltiin selektiivisesti ligniiniä hajoittavaa sientä (white rot fungus), Ceriporiopsis subvermispora.
Kaksi tällaista happoa kuvataan tässä lähteessä.

http://www.cyberlipid.org/images/pict269.gif

Seriporiinihapot vaimensivat raudan redox-reaktioita niin, että Fenton reaktion aiheuttama OH-radikaalin tuotto miedontui rautareduktanttien hydrokinonin ja cysteiinin läsnäollessa (2002). Pääteltiin, että samalla kun sellulolyyttisesti aktiivit happilajit (•OH, hydroksyyliradikaali) vaimentuivat näistä rasvahappometaboliiteista, ne vaikuttivat selektiivistä ligniinin pilkkoutumsita ja samalla selluloosan hajoaminen oli minimaalista.